长肠道与肉食习性的生物学悖论
在传统的生物学认知中,植食性动物通常拥有极其冗长的消化道,这是为了应对植物细胞壁坚韧、难以分解且营养密度低的特点,通过延长食物在体内的停留时间来最大化发酵和吸收效率。然而,自然界中存在着一类特殊的生物,它们虽然保留了适应高纤维饮食的长肠道结构,却在摄食行为上表现出明显的捕食倾向,甚至会主动咬碎坚硬的贝壳以获取其中的软体组织。这种生理结构与饮食习惯的错位,打破了“肠长必植食”的简单二元对立,揭示了演化过程中资源利用策略的复杂性。
这类神秘生物主要分布在淡水生态系统及部分浅海区域,其代表物种如某些底栖性甲壳类或特定种类的软体动物捕食者。它们并非传统意义上的顶级掠食者,而是处于食物链中段的机会主义者。尽管拥有处理植物碎屑和藻类的生理基础,但在食物匮乏或季节性变化时,它们会迅速切换摄食模式。这种灵活性使得它们能在竞争激烈的生态位中生存,长肠道不再仅仅是发酵植物的场所,更成为了储存高能量密度猎物(如虾、鱼卵或小型甲壳类)的缓冲仓,以应对捕食后可能出现的饥饿期。
咬碎贝壳的机械适应与捕食策略
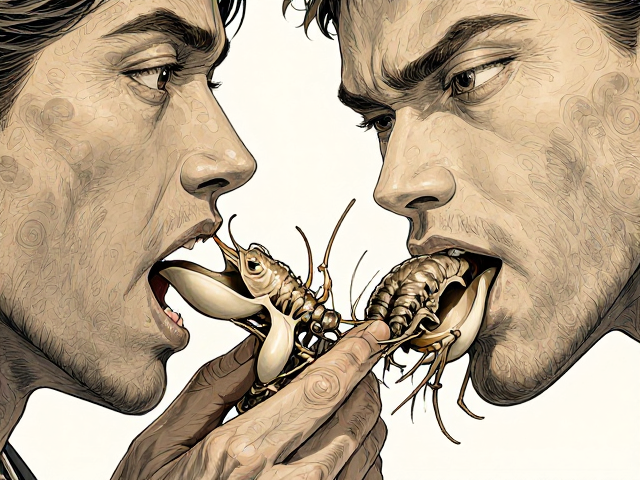
面对坚硬的贝壳防御,这类生物演化出了精密的机械适应结构。其颚部肌肉发达,咬合力远超同体型植食性近亲,能够产生足以压碎双壳类或腹足类外壳的压强。观察发现,它们通常利用螯足或特化的口器固定猎物,随后通过高频振动或持续施加压力,寻找贝壳结构的应力薄弱点进行突破。这种行为不仅是为了获取蛋白质,更是为了获取贝壳中富含的钙质,这对于维持自身甲壳或外壳的生长与修复至关重要。
捕食过程并非无脑蛮干,而是伴随着严密的感知与试错学习。生物体表面的触觉毛和化学感受器会精确感知猎物外壳的厚度与材质,从而调整施力角度。在自然环境中,这种捕食行为对底栖群落结构有着显著影响。通过控制小型贝类和甲壳动物的种群数量,它们间接促进了水体中藻类的生长平衡,扮演着生态系统中关键的功能群角色。这种介于滤食者与掠食者之间的中间形态,展示了生物在能量获取上的极致优化。
长肠道在混合饮食下的生理重构
长肠道在应对混合饮食时,其生理机能会发生动态调整。当摄入高纤维植物时,肠道微生物群落会迅速增殖,分解纤维素产生短链脂肪酸供能;而当摄入动物蛋白和脂肪时,肠道pH值、酶分泌类型及蠕动频率会立即做出反应。这种可塑性使得生物能够在不同季节或环境压力下,无缝切换能量来源。长肠道在此时表现为一种高效的“通用处理器”,而非单一功能的“发酵罐”。
这种生理上的双重适应能力,也体现在其代谢效率上。研究表明,在捕食后,其肠道吸收速率显著提升,能快速将猎物中的氨基酸和脂质转化为体脂储备。这种储备机制对于应对冬季或繁殖期的能量消耗至关重要。长肠道不仅提供了物理上的容纳空间,更通过神经内分泌系统的调控,实现了消化酶谱系的动态重组,确保了无论摄入的是坚韧的植物纤维还是高油的虾肉,都能被高效转化为生命活动所需的能量。
生态位中的角色与演化意义
在淡水或浅海生态系统中,这类生物的存在填补了传统植食者与肉食者之间的生态空缺。它们既像过滤器一样清理水体中的有机碎屑,又像小型捕食者一样调控底栖无脊椎动物的种群密度。这种双重身份使得生态系统更加稳定,增强了系统对环境扰动的抵抗力。当藻类爆发时,它们大量摄食植物;当藻类减少时,捕食行为则成为主要的能量获取途径,这种缓冲机制避免了单一食物资源枯竭导致的种群崩溃。
从演化角度来看,这种长肠道适应植食却捕食贝壳与虾鱼的特性,是自然选择对多变环境的直接回应。它证明了生物结构并非一成不变,而是会根据生态压力进行功能重组。这种“一专多能”的生存策略,使得该类生物在地质历史时期的多次环境剧变中得以幸存并扩散。它们的存在提醒我们,生物分类学上的界限在自然行为的复杂性面前往往显得模糊,真正的演化逻辑在于生存与繁殖的成功,而非严格的形态或习性归类。