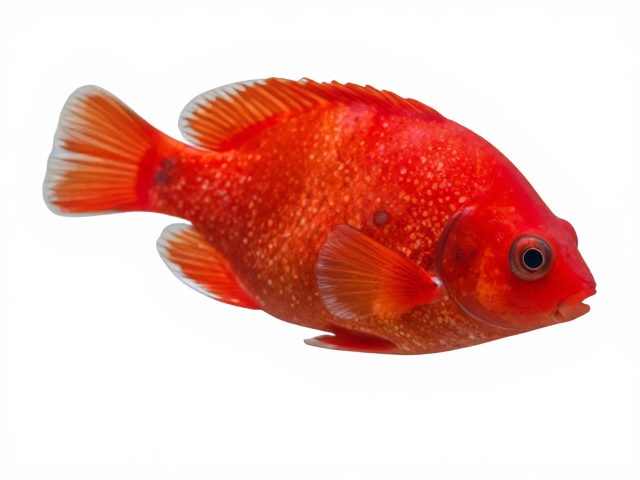
全红个体为何带斑点:显性基因与隐性表达的博弈
在观赏鱼与宠物的繁育领域,全红体色常被视为高纯度基因型的直观体现,但实际养殖过程中,全红个体身上偶尔浮现的斑点现象,往往打破了“纯色即完美”的认知惯性。这种现象并非单纯的病理性色素沉积或环境应激导致的体色紊乱,其核心逻辑更多指向遗传学中的杂合子表达与隐性基因残留。当亲本双方中至少一方携带非全红的隐性基因片段,或者全红性状本身由多基因控制且存在上位效应时,子代在表现型上便可能出现色素分布不均的“漏色”或斑点。
斑点的具体形态与分布密度,通常与黑色素细胞或红色素细胞在胚胎发育早期的迁移路径及定植情况密切相关。若控制红色素合成的基因位点处于杂合状态,部分体表的色素细胞可能未能完全转化为红色素,从而保留底色或形成局部色素团块。这种遗传逻辑解释了为何同一批次、饲养环境高度一致的全红个体中,斑点出现的个体比例存在显著差异,其本质是基因表达过程中的随机性与显隐性关系的微观体现。
杂交显色背后的分子机制解析
从分子遗传学视角审视,体色斑点的形成涉及色素合成通路的关键酶活性差异。以常见的鲤科或观赏鱼类为例,红色素(如虾青素)的合成需要多种酶蛋白参与,若编码这些酶的结构基因存在突变或表达调控区域的变异,会导致色素合成效率在局部组织出现高低不一。当全红个体为杂合子时,其体内两种等位基因表达的蛋白可能产生竞争性抑制或功能互补不足,使得色素沉积在皮肤不同区域呈现出不均匀的颗粒状分布,即肉眼可见的斑点。
此外,表观遗传修饰如DNA甲基化水平也会影响色素相关基因的转录效率。在杂交背景下,不同亲本的表观遗传标记可能发生重编程,导致某些控制色素细胞分化或迁移的基因(如MITfamily基因家族成员)表达水平波动。这种波动并非由DNA序列改变引起,而是影响了基因的可及性,使得原本应均匀分布的色素细胞在局部区域过度聚集或完全缺失,从而在全红底色上形成视觉上的斑点特征。
选育技巧中的基因型筛选策略
针对全红个体带斑点的遗传特性,选育工作需从单纯的外观筛选转向基因型与表现型的双重评估。建立严密的系谱记录是基础,通过追踪亲本及其近亲的体色表现,识别出血统中隐藏的隐性斑点基因或杂合位点。对于初现斑点的全红个体,不应立即淘汰,而需将其与已知纯合全红个体进行测交实验,观察子代斑点出现的频率与类型,以此推断该个体携带的基因型组合,从而判断其作为亲本的遗传稳定性。
在实际操作中,采用标记辅助选择(MAS)若能获取相关分子标记数据,可大幅提高选育效率。通过检测与色素合成通路关键基因紧密连锁的分子标记,可以在幼鱼阶段预测其最终体色的均匀度,提前剔除高概率携带杂合不利基因型的个体。同时,结合家系内比较分析,若某全红亲本产生的子代中斑点比例显著高于其他家系,则提示该亲本可能携带多个微效负面基因,需降低其繁殖权重,逐步通过回交或测交手段净化其遗传背景。
环境因子对显色表现的调控作用
虽然遗传基础决定了体色的潜在上限,但环境因子会显著影响基因的最终表达效果,进而影响斑点的可见程度。水温、光照强度及水质参数(如pH值、硬度)会调节鱼类或动物的代谢速率,进而影响色素细胞的活性与色素分子的稳定性。例如,在低温环境下,某些全红个体的红色素合成受阻,可能导致原本因遗传杂合而形成的微弱色素不均现象被放大,表现为明显的深色斑点;而在适宜且稳定的高温环境下,色素合成酶活性增强,可能掩盖部分因杂合导致的色素缺陷,使体色看起来更为均匀。
饲料中的营养组成也是关键调控变量。类胡萝卜素等外源性色素的前体供应直接影响体内色素沉积的饱和度。若全红个体处于营养匮乏状态,色素细胞无法获得足够的合成底物,可能导致局部色素沉积不足,形成浅色斑点或白点;反之,过量摄入某些非目标色素可能干扰内源色素的合成路径,导致色素分布异常。因此,在选育过程中,保持环境参数的稳定与营养供给的均衡,有助于区分遗传性斑点与环境性体色紊乱,确保选育目标的准确性。
长期选育中的种群遗传管理
长期维持全红性状的纯度与均匀度,需要科学的种群遗传管理,避免近交衰退导致的隐性有害基因累积。随着选育代数的增加,种群基因库可能逐渐缩小,若忽视遗传多样性的保护,全红个体可能因纯合度过高而伴随其他生理缺陷,或因隐性有害基因的表达导致体色出现不可控的斑点变异。建立核心育种群与扩繁群的双层管理体系,定期引入具有优良全红性状但遗传背景不同的个体进行改良,是维持种群遗传健康的有效手段。
通过统计分析与大数据记录,建立体色性状与遗传参数的关联模型,有助于预测长期选育的效果。监测全红个体斑点出现的频率变化趋势,结合系谱数据分析基因流动情况,可以及时调整配种方案。例如,当发现某高价值全红血统中斑点出现率逐年上升,需排查是否因过度近交导致隐性基因表达,进而通过引入远缘血缘或重新评估亲本选择策略,恢复体色的均匀度与遗传稳定性,确保全红性状在种群中的可持续传承。