黄金鳉体色形成的生物学基础
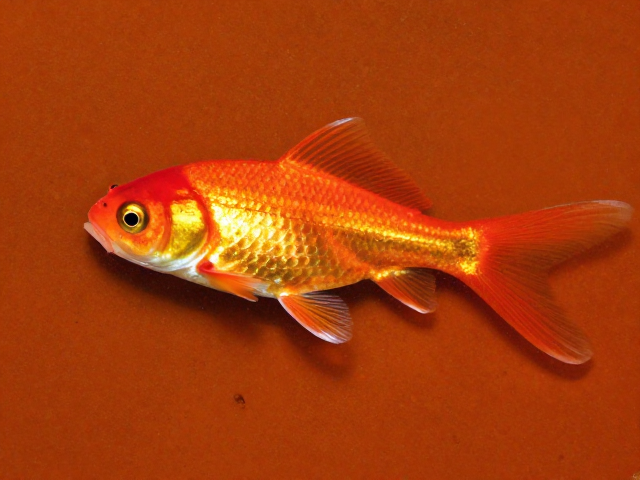
黄金鳉(Aplocheilus pictus)的体色表现并非单一因素作用的结果,而是遗传基因与环境压力共同构建的复杂生理过程。其体表的金色光泽主要源于真皮层中富含的鸟嘌呤和类胡萝卜素沉积,这些色素细胞在胚胎发育阶段便开始分化,并在成鱼阶段受激素水平影响产生动态变化。不同于普通观赏鱼,黄金鳉的显色机制具有高度特异性,其金黄色素细胞(xanthophores)与黑色素细胞(melanophores)的分布密度直接决定了整体视觉效果的明暗与饱和度。
在自然种群中,个体差异会导致显色能力的显著不同。部分个体因基因表达活跃,能更高效地将摄食摄入的类胡萝卜素转化为稳定的金黄色素,从而呈现出浓郁且均匀的金色沉淀。这种生物特性使得不同血统或野生采集源的黄金鳉在色泽表现上存在天然界限,养殖者通常通过观察亲本的显色稳定性来预判子代的潜在表现,而非依赖外部添加剂强行改变其生理结构。
环境因子对色素细胞的调控机制
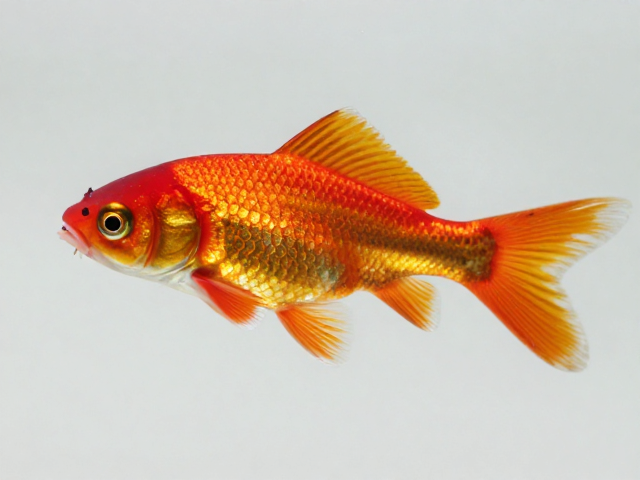
水质参数是调控黄金鳉色素细胞活性的关键外部变量。水温的细微波动会影响鱼体新陈代谢速率,进而影响色素合成酶的活性。在适宜的水温区间(22-26℃)内,鱼体代谢稳定,色素细胞能保持正常的合成与转运功能;若水温过低,代谢减缓会导致色素沉积不足,体色显得黯淡无光;反之,过高的水温可能加速色素分解,导致金色沉淀流失。因此,维持恒定的水温是保留黄金鳉金色沉淀的基础物理条件。
光照周期与强度同样扮演着不可或缺的角色。充足且柔和的光照能促进鱼体视觉系统的发育,间接刺激神经内分泌系统,调节黑色素细胞与黄色素细胞的比例。在模拟自然光照环境下,黄金鳉的体色通常更为鲜亮,因为光线能激发色素细胞内的微管结构,使色素颗粒分布更加均匀。然而,过度强烈的直射光可能导致鱼体产生应激反应,促使黑色素细胞扩张以保护自身,从而掩盖金色,因此在养殖环境中,柔和的漫射光优于强光直射。
营养摄入与显色物质的转化路径
黄金鳉的体色深度与其饮食中类胡萝卜素的含量有着严密的正相关关系。自然界中,黄金鳉通过捕食小型甲壳类动物和昆虫幼虫获取天然的虾青素和叶黄素。这些外源性色素分子在经过肠道吸收后,通过血液循环运输至真皮层的色素细胞中,与特定的蛋白质结合形成稳定的复合物,从而固定为持久的金黄色。这一生物转化过程需要充足的蛋白质作为载体,单纯补充色素而缺乏蛋白质支持,难以实现高效的金色沉淀。
人工养殖环境下,饲料配方需严格模拟自然摄食结构。高质量的丰年虾、水蚤以及含有天然螺旋藻成分的专用饲料,能提供足量的天然色素前体。值得注意的是,合成色素在黄金鳉体内的留存率远低于天然色素,且易因代谢过快而褪色。因此,维持高比例的天然活饵或高品质天然成分饲料,是确保持久金色沉淀的核心营养策略。长期单一投喂缺乏色素来源的颗粒饲料,会导致色素细胞活性降低,体色逐渐泛白或呈现灰黄色。
遗传筛选与显色稳定性
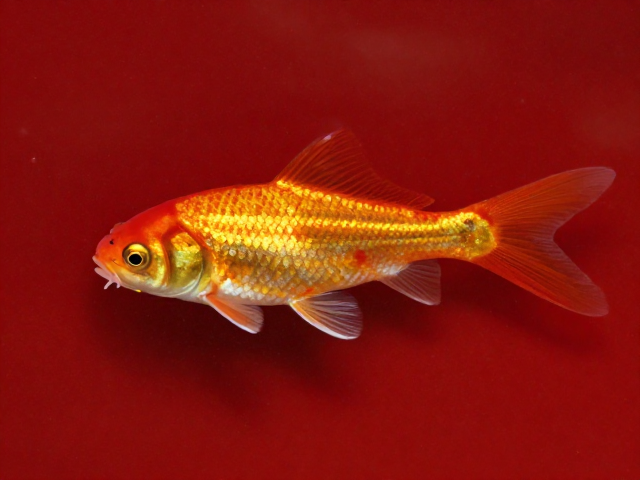
黄金鳉的显色能力具有明确的遗传基础,金色沉淀的稳定性会随世代更替出现分离现象。在育种实践中,显色稳定的个体通常携带高表达的金色素合成基因,这些基因在子代中遵循孟德尔遗传规律,但常伴随不完全显性特征。这意味着,即使亲本显色极佳,子代中也可能出现色度较浅或分布不均的个体。因此,显色并非简单的“全有或全无”,而是表现为连续的性状分布。
为了获得高纯度的金色沉淀个体,养殖者需建立严密的系谱记录,通过多代筛选剔除显色缺陷的基因型。野生种鱼因经过长期自然选择,其显色基因通常较为稳定,但个体差异较大;而经过长期人工选育的品系,虽显色一致性提高,但可能面临遗传多样性降低的风险。在实际操作中,观察幼鱼期(1-3个月)的显色趋势比观察成鱼更具预测价值,因为幼鱼期的色素沉积模式能更真实地反映其遗传潜力,而非环境应激导致的暂时性变色。